세포는 왜 신호를 키웠다가 곧 끄는가
ERK 신호의 증폭, 맥박, 되먹임과 종결이 세포의 증식·분화와 약물 반응을 어떻게 바꾸는지 설명합니다.
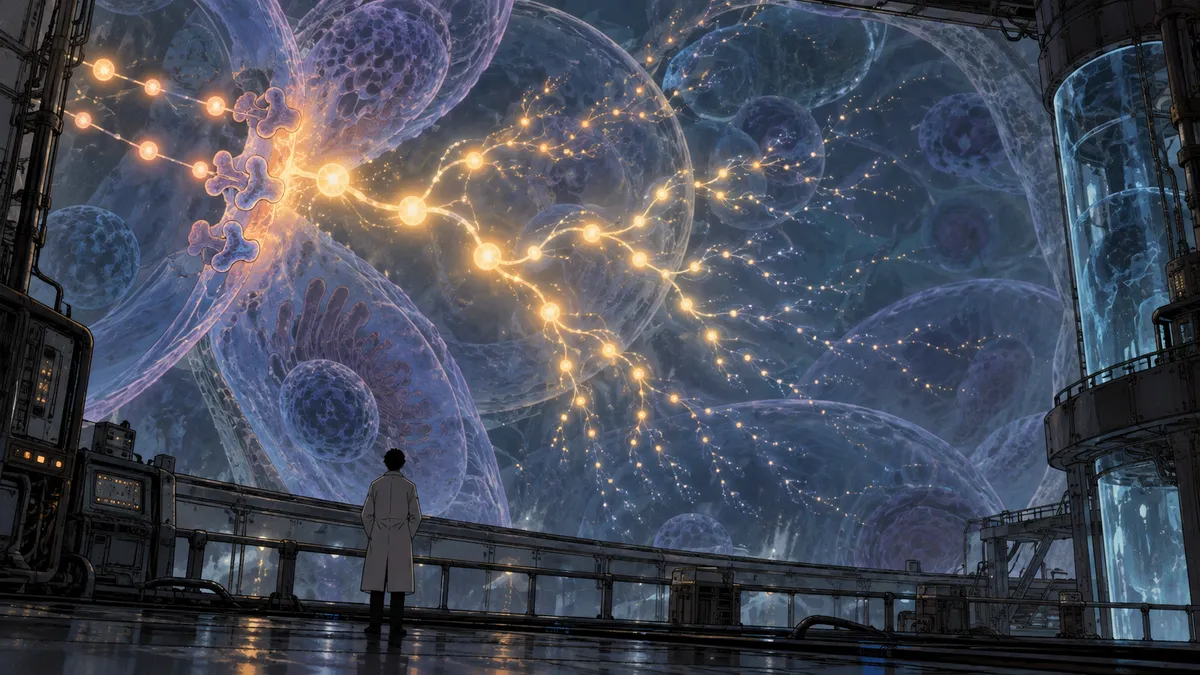
세포는 약한 신호를 크게 키우면서도 되먹임으로 반응의 길이와 간격을 제한합니다. 한 번 잰 신호의 세기보다 얼마나 오래, 몇 번 켜졌는지가 세포의 결정을 더 잘 설명할 수 있습니다.
바깥에 성장인자가 조금 늘었다고 세포가 곧바로 분열하지는 않는다. 세포막의 수용체가 자극을 받고 여러 단백질이 차례로 켜진 뒤, 핵 안의 유전자 발현까지 바뀌어야 한다. 이 긴 과정에서 작은 입력은 충분히 커져야 한다. 동시에 반응은 제때 끝나야 한다. 계속 켜진 성장 신호는 정상적인 조절이 아니라 질병의 조건이 될 수 있다.
세포 신호전달(cell signaling)은 세포가 안팎의 자극을 분자 반응과 기능 변화로 바꾸는 과정이다. 흔히 첫 분자가 다음 분자를 여러 개 켜는 연쇄반응으로 설명한다. 맞는 설명이지만 절반뿐이다. 살아 있는 세포에서 결과를 가르는 것은 한 시점의 신호 세기만이 아니다. 얼마나 오래 켜졌는지, 몇 번 반복됐는지, 같은 조건의 세포들이 얼마나 다르게 반응했는지도 중요하다.
EGFR-RAS-ERK 경로를 보면 이 점이 잘 드러난다. 성장인자가 EGFR에 붙으면 RAS, RAF, MEK, ERK가 차례로 활성화된다. 각 단계가 다음 단계를 켜면서 입력이 커진다. 그러나 ERK는 다시 앞단을 억제하고 수용체도 세포 안으로 들어가거나 재순환한다. 키우는 장치와 끄는 장치가 같은 회로 안에서 동시에 움직인다.
성장인자 농도는 ERK의 높이보다 맥박 횟수를 바꿨다
2013년 Albeck 연구팀은 살아 있는 유방 상피세포에서 ERK 활성을 장시간 관찰했다. EGF 농도가 올라가자 모든 세포의 ERK가 일정하게 높아진 것이 아니었다. ERK는 세포마다 비동기적인 맥박을 보였고 EGF 농도에 따라 맥박의 빈도와 지속시간이 달라졌다.
유전적으로 같은 자매세포 사이에서도 맥박 패턴은 달랐다. 그 차이는 DNA 복제를 시작하는 S기에 들어갈지와 연결됐다. EGFR 억제제는 ERK 맥박이 생기는 횟수를 줄였고 MEK 억제제는 각 맥박의 높이를 낮췄다. 같은 경로를 억제해도 개입 지점에 따라 시간 파형이 다르게 변한 것이다.
연구진은 여러 세포주에서 ERK 출력이 약 10% 아래로 떨어져야 증식이 사실상 멈췄다고 보고했다. 경로를 절반 억제했다고 세포 결과도 절반으로 줄어든다고 가정하면 안 된다는 뜻이다. 증폭된 회로에는 부분 억제를 견디는 여유가 남을 수 있다.
다만 10%라는 수치를 모든 암과 환자에게 적용할 수는 없다. 배양세포에서 측정한 증식 문턱이며 임상 반응을 직접 뜻하지 않는다. 여기서 판단하려면 수치 자체보다 어디를 억제했는가와 파형이 어떻게 바뀌었는가를 함께 봐야 한다.
서로 다른 세포의 ERK 활성 맥박을 장시간 추적하는 실험을 재구성한 생성 이미지.
같은 성장인자도 투입 간격이 달라지면 세포의 선택이 바뀐다
신호의 시간 배열이 세포 기능을 바꾼다는 근거는 PC-12 세포 실험에서 더 분명하게 보인다. PC-12는 쥐 부신에서 유래한 세포주로, 성장인자 조건에 따라 증식하거나 신경세포와 비슷한 형태로 분화한다.
2015년 Ryu 연구팀은 미세유체 장치로 EGF와 NGF를 정해진 시간만큼 공급하고 단일세포 ERK 활성을 측정했다. 짧은 성장인자 자극은 대체로 큰 첫 봉우리를 만든 뒤 빠르게 줄었다. 그러나 성장인자의 종류와 노출시간에 따라 일부 세포에서는 ERK 활성이 오래 유지됐다.
연구팀은 성장인자를 3분씩 주고 쉬는 시간을 바꾸는 실험도 했다. 높은 농도의 EGF를 3분 공급한 뒤 10분 또는 20분 쉬는 패턴은 신경돌기 성장을 동반한 분화를 유도했다. 60분 간격에서는 분화가 나타나지 않았다. 지속적으로 EGF를 주면 보통 증식 쪽 반응이 나타나지만 같은 EGF라도 시간 배열을 바꾸자 다른 결과가 나온 셈이다.
그렇다고 ERK 파형 하나가 모든 세포 운명을 결정한다고 볼 수는 없다. 저농도 NGF 조건에서는 ERK 활성을 시간에 따라 합친 값이 비슷해도 분화가 충분히 일어나지 않았다. 연구진은 다른 신호 경로가 함께 필요할 가능성을 제시했다. 시간 파형은 중요한 변수지만 유일한 변수는 아니다.
증폭은 평균 반응과 함께 세포 간 차이도 키운다
증폭을 단계마다 분자 수가 늘어나는 현상으로만 보면 놓치는 것이 있다. 작은 공간 차이가 큰 세포 상태 차이로 바뀔 수 있다.
2020년 Davies 연구팀은 한 세포가 분비한 amphiregulin이 주변 세포의 EGFR-RAS-ERK 경로를 어떻게 바꾸는지 살아 있는 세포에서 추적했다. 약한 국소 분비 차이는 세포 안에서 증폭됐다. 이어 Fra-1, c-Myc, Egr1 같은 표적 유전자가 ERK 파형을 서로 다르게 읽으면서 유전자 발현 차이가 계속 만들어졌다.
평균 ERK 값 하나만 보면 이런 과정은 사라진다. 한 세포는 짧고 높은 맥박을, 다른 세포는 낮지만 반복되는 맥박을 보일 수 있다. 평균은 같아도 표적 유전자가 읽는 결과는 다를 수 있다. 종양 모델에서 이런 차이는 일부 세포가 약물 뒤에도 살아남는 이유를 찾는 단서가 된다.
아직 환자의 치료 저항성을 증명한 것은 아니다. 이 연구는 살아 있는 세포 모델에서 국소 신호와 유전자 발현 차이를 연결했다. 세포 간 이질성이 실제 환자 예후를 얼마나 설명하는지는 별도 검증이 필요하다.
음성 되먹임은 브레이크이면서 완충 장치다
음성 되먹임(negative feedback)은 경로의 뒤쪽 출력이 앞쪽 단계를 낮춰 반응을 제한하는 조절이다. ERK 경로에서는 활성화된 ERK와 그 아래의 RSK2가 RAF나 SOS 같은 앞단을 억제한다. 자극이 계속돼도 반응이 줄어드는 적응과 탈감작이 여기서 생길 수 있다.
2022년 Dessauges 연구팀은 빛으로 FGFR 또는 RAS를 켜고 ERK 센서로 단일세포 반응을 관찰했다. FGFR부터 경로를 켰을 때는 ERK-RAF와 ERK-RSK2-SOS라는 두 음성 되먹임이 동시에 작동했다. 연구팀이 MAPK 관련 단백질 50개를 하나씩 줄였지만 경로는 대부분의 단일 교란에도 비교적 일정한 ERK 출력을 유지했다.
RAS를 직접 켜 RSK2 매개 되먹임을 우회하자 상황이 달라졌다. ERK 출력은 다른 단백질 교란과 약물에 더 민감해졌다. 사람 유방 상피세포의 ErbB2 과발현 모델에서도 RSK 억제와 MEK 억제를 함께 쓰자 MEK 억제만 했을 때보다 더 많은 세포의 ERK 활성이 낮고 평평해졌다.
되먹임은 신호를 끄기만 하는 장치가 아니었다. 세포마다 단백질 양이 달라도 출력이 지나치게 흔들리지 않도록 완충했다. 그래서 되먹임을 차단하면 억제제 효과가 커질 수 있지만 세포별 반응의 불균일성도 커질 수 있다. 병용 전략은 평균 억제율뿐 아니라 잔여 활성이 남는 세포군을 함께 봐야 한다.
경로 억제 뒤에도 남는 단일세포 반응을 비교하는 실험을 재구성한 생성 이미지.
강한 결합이 반드시 오래가는 신호를 만들지는 않는다
수용체에 얼마나 강하게 붙는지도 신호 지속시간과 같지 않다. 2017년 Freed 연구팀은 EGFR 리간드인 EGF, epiregulin과 epigen이 수용체 이합체를 어떻게 안정화하는지 구조와 세포 실험으로 비교했다.
Epiregulin과 epigen은 EGF보다 덜 안정한 EGFR 이합체를 만들었다. 그런데 신호는 오히려 더 오래 지속됐다. 유방암 세포의 반응도 EGF의 증식 연관 반응보다 분화 연관 반응에 가까웠다. 약한 결합이 약하고 짧은 출력으로 이어질 것이라는 단순한 예상과 달랐다.
수용체의 첫 결합 상태는 내부화, 재순환과 경로 안의 되먹임을 거쳐 시간 파형으로 바뀐다. 결합 친화도, 첫 반응의 크기와 지속시간을 같은 값처럼 읽으면 안 된다. 물론 이 결과도 특정 EGFR 리간드와 세포 모델에 한정된다. 약한 결합이 늘 긴 신호를 만든다는 일반 법칙은 아니다.
한 시점의 인산화량만으로는 약물 반응을 설명하기 어렵다
신호전달 실험은 자극 후 5분이나 30분에 세포를 모아 phospho-ERK 양을 재는 방식으로 자주 진행된다. 빠르고 비교하기 쉽지만 맥박과 세포별 차이를 지운다. 같은 평균값 아래에 전혀 다른 반응이 숨어 있을 수 있다.
| 측정 층 | 함께 확인할 값 | 알 수 있는 것 | 아직 알 수 없는 것 |
|---|---|---|---|
| 입력 | 농도, 노출시간, 반복 간격 | 세포가 받은 자극 | 실제 경로 출력 |
| 수용체 | 결합, 이합체, 내부화, 재순환 | 막에서 입력이 유지되는 방식 | 핵 안의 반응 |
| ERK 파형 | 진폭, 지속시간, 맥박 빈도, 세포별 분포 | 증폭과 되먹임의 결과 | 특정 유전자와 장기 기능 |
| 기능 | 증식, 분화, 이동, 생존 | 배양세포의 결과 | 동물과 환자의 효능·안전성 |
약물 후보를 평가할 때는 평균 phospho-ERK가 줄었는지만 볼 것이 아니라 맥박 빈도와 지속시간, 잔여 활성이 남은 세포의 비율을 확인할 필요가 있다. 한 단백질을 억제했는데 경로가 다시 살아난다면 약물이 약해서가 아니라 되먹임 구조가 바뀌었을 수도 있다.
이런 시간분해 단일세포 측정은 비용과 분석 부담이 크다. 더 복잡한 측정이 자동으로 더 좋은 제품이 되는 것도 아니다. 환자 유래 모델에서 후보 탈락, 용량 결정이나 바이오마커 선택을 실제로 개선해야 개발 도구로서 가치가 생긴다. 세포 기전을 자세히 측정했다는 사실만으로 임상 효능, 규제 승인이나 유료 수요가 증명되지는 않는다.
Bio 지식 지도에서 세포 신호를 읽을 때는 한 시점의 세기보다 시간에 따른 변화를 함께 봐야 한다. 입력, 수용체, ERK 파형과 기능 결과를 나눠 보면 증폭과 종결이 어디서 달라졌는지 추적할 수 있다.
세포는 약한 신호를 키운 뒤 단순히 전원을 끄지 않는다. 입력을 맥박과 지속시간으로 바꾸고 되먹임으로 그 파형을 제한하며 표적 유전자는 각기 다른 시간 창으로 이를 읽는다. 세포가 받은 메시지를 이해하려면 얼마나 강했는가와 함께 얼마나 오래, 몇 번 켜졌는가를 물어야 한다.
출처
- Albeck et al., Frequency-modulated pulses of ERK activity transmit quantitative proliferation signals, Molecular Cell, 2013
- Ryu et al., Frequency modulation of ERK activation dynamics rewires cell fate, Molecular Systems Biology, 2015
- Davies et al., Systems-Level Properties of EGFR-RAS-ERK Signaling Amplify Local Signals to Generate Dynamic Gene Expression Heterogeneity, Cell Systems, 2020
- Freed et al., EGFR Ligands Differentially Stabilize Receptor Dimers to Specify Signaling Kinetics, Cell, 2017
- Dessauges et al., Optogenetic actuator–ERK biosensor circuits identify MAPK network nodes that shape ERK dynamics, Molecular Systems Biology, 2022
- 세포는 신호의 진폭뿐 아니라 지속시간과 반복 빈도로 입력을 구분합니다.
- 음성 되먹임은 과도한 출력을 낮추면서 단백질 양과 약물 교란에도 회로를 안정시킵니다.
- 같은 성장인자도 투입 간격이 달라지면 ERK 파형과 세포의 선택이 달라질 수 있습니다.
- 약물 반응은 평균 인산화량과 함께 잔여 활성이 남는 세포의 분포까지 확인해야 합니다.
- 세포 신호가 강하면 항상 더 오래 지속되나요?
- 그렇지 않습니다. 수용체 내부화와 음성 되먹임 때문에 큰 첫 반응이 빠르게 줄 수 있습니다. EGFR 연구에서는 덜 안정한 수용체 이합체가 오히려 더 오래가는 신호를 만든 사례도 확인됐습니다.
- 음성 되먹임은 신호를 약하게 만들기만 하나요?
- 신호를 제한하는 동시에 회로를 안정시키기도 합니다. ERK 경로의 되먹임을 우회하면 약물에 더 민감해질 수 있지만 세포별 반응 차이도 커질 수 있습니다.
- phospho-ERK를 한 번 측정하면 약물 효과를 알 수 있나요?
- 한 시점의 평균값만으로는 맥박 빈도와 지속시간, 반응하지 않은 세포군을 놓칠 수 있습니다. 기능 결과와 연결하려면 시간 경과와 단일세포 분포를 함께 확인해야 합니다.
- Albeck et al. — Frequency-modulated pulses of ERK activity transmit quantitative proliferation signals
- Ryu et al. — Frequency modulation of ERK activation dynamics rewires cell fate
- Davies et al. — Systems-Level Properties of EGFR-RAS-ERK Signaling Amplify Local Signals
- Freed et al. — EGFR Ligands Differentially Stabilize Receptor Dimers to Specify Signaling Kinetics
- Dessauges et al. — Optogenetic actuator–ERK biosensor circuits identify MAPK network nodes